跑步经济性的生物力学基础与能量效率
跑步经济性并非单纯指速度,而是指在给定速度下维持跑步姿态所需的氧气消耗或能量代谢水平。这一指标直接反映了人体将化学能转化为机械功的效率,是区分精英跑者与业余跑者的核心生理壁垒。当跑步经济性高时,身体能以更低的代谢成本维持相同的配速,这意味着在长距离耐力运动中,糖原和脂肪的储备能支撑更久的高强度输出。优化这一机制,本质上是在减少无效做功,让每一次蹬地和摆臂都精准服务于向前推进的动力链条。
生物力学层面的低效动作是破坏跑步经济性的主要元凶。过大的垂直振幅会导致重心上下起伏,消耗大量能量用于对抗重力而非向前移动;而步频过低、步幅过大往往伴随着“刹车效应”,即脚部落地点超过身体重心投影点,产生巨大的制动力。这种力学结构上的冗余动作,迫使肌肉群进行等长收缩以稳定关节,从而增加静态负荷,加速局部肌肉疲劳。通过调整落地角度和减少躯干晃动,可以显著降低维持平衡所需的额外能量消耗,使跑步姿态更加流畅且节能。
发力机制对乳酸生成路径的调控作用
乳酸并非传统认知中的代谢废物,而是重要的能量底物和信号分子。在高强度跑步中,当肌肉收缩速度超过氧化代谢系统的供能上限,丙酮酸无法完全进入三羧酸循环,便在乳酸脱氢酶作用下转化为乳酸。优化发力机制,特别是增强髋关节驱动能力,能够提升慢肌纤维的募集比例。慢肌纤维富含线粒体和毛细血管,其有氧代谢能力强,能更有效地处理丙酮酸,从而从源头上减少乳酸的大量堆积。
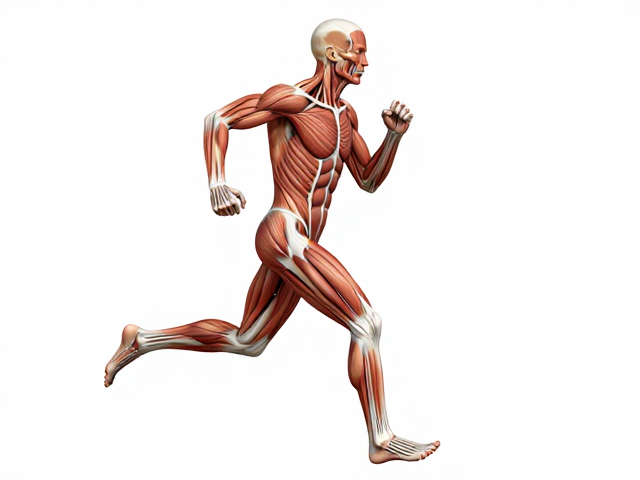
正确的后侧链发力模式,即利用臀大肌和腘绳肌的力量推动身体向前,而非过度依赖股四头肌进行“踩踏”式动作,能显著降低肌肉内部的剪切力和代谢压力。这种发力模式使得肌肉纤维在收缩时更为协同,减少了因肌肉间协调性不足导致的微观损伤和炎症反应。当肌肉处于更高效的收缩状态时,细胞内的pH值波动更小,酸性环境对酶活性的抑制作用减弱,进而延缓了疲劳感的出现,使得乳酸生成速率与肌肉利用速率之间保持更紧密的动态平衡。
优化清除效率的生理适应与训练策略
乳酸的清除主要依赖于肌肉组织的再氧化、转化为葡萄糖以及随血液输送至心脏、肾脏等器官进行代谢。提升这一清除效率的关键在于增强毛细血管密度和线粒体功能。通过持续的低强度有氧训练(Zone 2),可以促进肌纤维中毛细血管网的增生,加速乳酸从肌肉组织向血液的转运。同时,这种训练能刺激线粒体生物合成,增加乳酸脱氢酶同工酶的比例,特别是LDH-1型,它更有利于乳酸向丙酮酸的逆向转化,从而在高强度间歇中提供即时的能量支持。
高强度间歇训练(HIIT)在乳酸清除机制中扮演着关键角色。通过定期刺激身体承受高于乳酸阈值的负荷,可以诱导身体产生适应性反应,提高缓冲系统(如碳酸氢盐系统)的能力,增强肌肉对氢离子的耐受度。这种适应使得肌肉在乳酸浓度较高时仍能维持收缩功能,并加速乳酸向周围组织的扩散。此外,核心肌群的稳定性训练有助于保持骨盆中立,减少因姿态不稳导致的额外肌肉代偿,从而降低整体代谢负担,间接提升了乳酸清除系统的工作效率。
技术细节与神经肌肉协调的深层联系
神经肌肉控制能力决定了发力模式的精确度。当神经系统能高效协调深层稳定肌群与表层运动肌群时,跑步动作的僵硬感会降低,关节活动范围更加自然。这种协调性减少了不必要的肌肉紧张,降低了静息代谢率。在跑步过程中,感知觉反馈(本体感觉)的敏锐度至关重要,跑者需要通过训练建立对落地时机、重心位置和肌肉张力的精确感知,从而在动态中实时微调发力方式。
技术细节的打磨应聚焦于“松紧交替”的节奏感。紧张的肌肉消耗更多氧气并产生更多热量,而放松的肌肉则有利于乳酸和代谢产物的排出。通过节奏跑或法特莱克跑,跑者可以在不同配速和地形中体验肌肉的放松与收缩,逐步内化高效的发力模式。这种训练不仅提升了肌肉的弹性势能利用效率,还优化了神经对肌肉收缩的调控精度,使得在疲劳状态下仍能保持相对规范的跑步姿态,从而间接维持乳酸生成的可控性和清除的高效性。